POTENCIALES DE ACCIÓN MIOCARDICOS.

Cuando una célula miocárdica ha sido estimulada por potenciales de acción que se originan en el nodo SA, produce sus propios potenciales de acción. Casi todas las células miocárdicas tienen potenciales de membrana en reposo de alrededor de −85 mV. Cuando son estimuladas por potenciales de acción provenientes de una región marcapasos, estas células quedan despolarizadas al umbral, punto al cual sus compuertas de Na+ reguladas por voltaje se abren. La fase ascendente del potencial de acción de células que no son marcapasos se debe a la difusión hacia adentro rápida de Na+ a través de canales de Na+ rápidos. Después de la reversión rápida de la polaridad de membrana, el potencial de membrana declina con rapidez hasta alrededor de −15 mV, a diferencia del potencial de acción de otras células, esta magnitud de despolarización se mantiene durante 200 a 300 ms antes de la repolarización. Esta fase de meseta se produce por una difusión hacia adentro lenta de Ca2+ a través de canales de Ca2+ lentos, lo cual equilibra una difusión hacia fuera lenta de K+. La repolarización rápida al final de la fase de meseta se logra, como en otras células, mediante la abertura de canales de K+ sensibles a voltaje y la difusión resultante rápida de K+ hacia fuera.   La fase de meseta larga del potencial de acción miocárdico la distingue de los potenciales de acción parecidos a espiga en axones y fibras musculares. La fase de meseta se acompaña de la entrada de Ca2+, que empieza el acoplamiento entre excitación y contracción . Así, la contracción miocárdica acompaña al potencial de acción largo , y se completa antes de que la membrana se recupere de su periodo refractario. Así, este periodo refractario largo evita que ocurran en el miocardio suma y tétanos, como puede suceder en los músculos esqueléticos .

* A continuación se anexa un diagrama de flujo con  una serie de eventos necesarios para que ocurra el potencial de marcapasos que se trasmitirá a las células ventriculares y las células de Purkinje.


GENERALIDADES DE CORAZÓN.

El corazón es un músculo situado en el centro izquierda del pecho (en el llamado mediastino). Está encima del diafragma y entre los pulmones. Tiene forma triangular con el vértice situado hacia abajo y virado hacia la izquierda. Su volumen depende del sexo y edad de la persona.
El tejido muscular es más abundante en el ventrículo izquierdo, que debe ejercer el trabajo de expulsar la sangre hacia todas las partes del cuerpo, así que la pared del ventrículo izquierdo es el doble de gruesa que la del derecho.
Su función es bombear la sangre con oxígeno y nutrientes al resto de los órganos del cuerpo a través de los vasos sanguíneos (junto con los que conforma el denominado sistema circulatorio)

El corazón de una persona adulta late aproximadamente unas 80 veces por minuto, esto es las denominadas pulsaciones. Sin embargo la frecuencia de las mismas dependerá de las necesidades del organismo. Estas se inician antes de nacer, a las pocas semanas de gestación y se mantienen durante toda la vida del individuo debido al metabolismo especial de la fibra cardíaca.

* A continuación se añade una serie de tres esquemas que explica las generalidades y anatomía del corazón.


COAGULACIÓN SANGUÍNEA.

Cuando hay lesión de un vaso sanguíneo, se activan varios mecanismos fisiológicos que promueven la hemostasia, o el cese del sangrado (hemo, “sangre”; stasia, “detención”). La solución de continuidad del revestimiento endotelial de un vaso expone a la sangre a proteínas colágeno del tejido conjuntivo subendotelial. Esto inicia tres mecanismos hemostáticos separados, pero que se superponen: 1) vasoconstricción, 2) la formación de un tapón plaquetario y 3) la producción de una red de proteínas fibrina que penetran el tapón plaquetario y lo rodean. En ausencia de daño de vasos sanguíneos, las plaquetas se repelen entre sí, y del endotelio de los vasos sanguíneos. El endotelio es un epitelio escamoso simple que está sobre colágeno de tejido conjuntivo y otras proteínas que son capaces de activar plaquetas para empezar la formación del coágulo. Así, un epitelio intacto separa físicamente la sangre del colágeno y otros activadores plaquetarios en la pared del vaso. Además, las células endoteliales secretan prostaciclina y óxido nítrico (NO), que 1) actúan como vasodilatadores y 2) actúan sobre las plaquetas para inhibir la agregación plaquetaria. Además, la membrana plasmática de células endoteliales contiene una enzima conocida como CD39, cuyo sitio activo mira hacia la sangre. La enzima CD39 desintegra ADP en la sangre hacia AMP y Pi (las plaquetas activadas liberan ADP y promueven la agregación plaquetaria). Estos mecanismos protectores se necesitan para asegurar que las plaquetas no se adhirieran a la pared del vaso ni una a otra, de modo que no se obstaculice el flujo de sangre cuando el endotelio está intacto.

* A continuación se añade un esquema que explica los mecanismos que se llevan a cabo en la coagulación sanguínea.


VASOS SANGUÍNEOS.

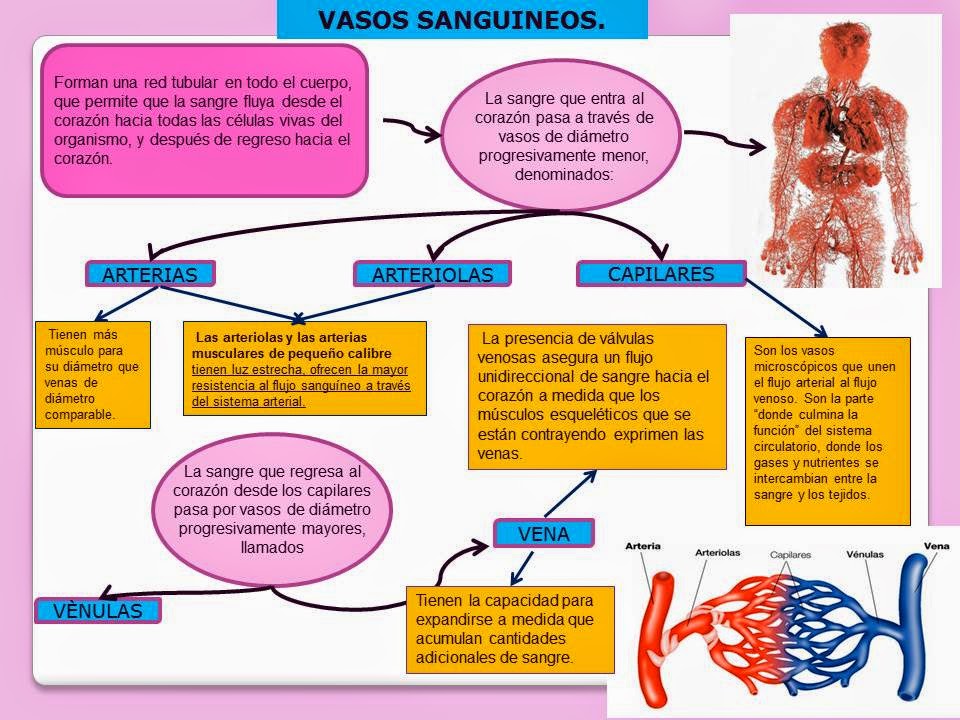
Los vasos sanguíneos forman una red tubular en todo el cuerpo, que permite que la sangre fluya desde el corazón hacia todas las células vivas del organismo, y después de regreso hacia el corazón. La capa de músculo grueso de las arterias les permite transportar sangre eyectada desde el corazón a presión alta. La capa muscular más delgada de las venas les permite distenderse cuando una cantidad aumentada de sangre entra a ellas, y sus válvulas unidireccionales aseguran que la sangre fluya de regreso hacia el corazón. Los capilares facilitan el intercambio rápido de materiales entre la sangre y el líquido intersticial.En la aorta y otras arterias de gran calibre hay muchas capas de fibras de elastina entre las células de músculo liso de la túnica media; dichas arterias elásticas de gran calibre se expanden cuando la presión de la sangre aumenta como resultado de la contracción de los ventrículos; cuando la presión arterial disminuye durante la relajación de los ventrículos. Este retroceso elástico impulsa la sangre durante la fase diastólica (la fase más prolongada del ciclo cardíaco) cuando el corazón está en reposo y no está proporcionando una presión impulsora.   Las arterias de pequeño calibre y las arteriolas son menos elásticas que las arterias de mayor calibre, y tienen una capa de músculo liso más gruesa para sus diámetros; por ende, a diferencia de las arterias elásticas de mayor calibre, el diámetro de las arterias musculares de menor calibre sólo cambia un poco a medida que la presión de la sangre aumenta y disminuye durante la actividad de bombeo del corazón.

* A continuación se añade un esquema explicando las características mas importantes de los vasos sanguíneos.


SISTEMA ABO

Hay ciertas moléculas en la superficie de todas las células en el cuerpo que pueden ser reconocidas como extrañas por el sistema inmune de otro individuo, a estas moléculas se les conoce como antígenos (Ag).

Como parte de la respuesta inmutaría, algunos linfocitos secretan una clase de proteínas llamas anticuerpos (Ac), estas proteínas se unen de manera especifica con Ag.

Los Ag de los eritrocitos tienen importancia clínica, debido a esto se deben de realizar pruebas de compatibilidad entre los receptores y donadores en las transfusiones sanguíneas.
Hay varios grupos de Ag, el principal es el sistema
ABO. De acuerdo a la presencia de los tipos de Ag en la superficie de los eritrocitos, las personas pueden ser tipo A ( si presenta solo Ag A), tipo B (si lo presenta Ag B), tipo AB (cuando presenta Ag A y B) o tipo O (cuando no presenta ni Ag A ni B).
Los genes que codifican para el sistema ABO esta ubicados en el cromosoma 9, cada persona hereda dos genes, uno procedente de cada progenitor. Los genes que codifican para los Ag A o B son dominantes, mientras que el que codifica para el Ag O es recesivo.
El sistema inmunitario muestra tolerancia a sus propios Ag, es decir, las personas que tiene Ag A no presentan Ac anti-A, por lo contrario si sintetizan Ac anti-B. Esto sucede de manera análoga para los Ag B.
Las personas tipo AB no presentan tolerancia a estos dos Ag, por lo que no produce ni Ac anti-A ni anti-B (receptores universales). En cambio los tipos O no presentan tolerancia a ningún Ag por lo que si presentan Ac anti-A y anti-B (donadores universales por carecen de Ag).

REACCIONES DE TRANSFUSIÓN: antes de realizar las transfusiones sanguíneas se debe de realizar una prueba de compatibilidad cruzada mayor, al mezclar suero del receptor con eritrocitos del donador. Si los tipos no coinciden los Ac del receptor atacan los eritrocitos del donador y forman puentes que hacen que las células se amontonen, o se aglutinen. Por estas razones, los Ag A y B a veces se denominan aglutinógenos y los Ac contra ellos aglutininas.
Los errores de transfusión que dan por resultado la aglutinación pueden llevar a un bloqueo de vasos sanguíneos de pequeño calibre y causar hemolisis, que puede dañar los órganos.

* A continuación se añade un esquema donde se explica con mas detalle el sistema ABO.


HEMOGLOBINA, ERITROPOYESIS, LEUCOPOYESIS, TROMBOPOYESIS.

Hemoglobina.
La hemoglobina (HB) es una proteína globular, que esta presente en altas concentraciones en lo glóbulos rojos y se
encarga del transporte de O2 del aparato respiratorio hacia los tejidos periféricos; y del transporte de CO2 y protones (H+) de los tejidos periféricos hasta los pulmones para ser excretados. Los valores normales en sangre son de 13 – 18 g/ dl en el hombre y 12 – 16 g/dl en la mujer.
La hemoglobina es una proteína con  estructura cuaternaria, es decir, esta constituida  por cuatro cadenas polipeptídicas , dos  α y dos β (hemoglobina adulta- HbA); dos α  y dos δ (forma minoritaria de hemoglobina  adulta- HbA2- normal 2%); dos α y dos γ  (hemoglobina fetal- HbF).
Las cadenas polipeptídicas alfa contienen  141 aminoácidos son las alfa, las de 146 β, γ, δ)y  difieren en la secuencia de aminoácidos.  La estructura secundaria es muy similar: cada  una exhibe 8 segmentos helicoidales  designados con las letras A a la H. 
Las cuatro cadenas polipeptídicas de la  Hb contienen cada una un grupo prostético, el  Hem, un tetrapirrol cíclico, que les  proporciona el color rojo a los hematíes. Un grupo prostético es una porción no  polipeptídica que forma parte de una proteína  en su estado funcional. El átomo de hierro se  encuentra en estado de oxidación ferroso (+2)  y puede formar 5 o 6 enlaces de coordinación
dependiendo de la unión del oxigeno a la Hb  (oxiHb, desoxiHb). Cuatro de estos enlaces se  producen con los nitrógenos pirrólicos de la
porfirina en un plano horizontal.
La biosíntesis de la Hb guarda estrecha relación con la eritropoyesis. La expresión genética y el contenido de Hb acompañan la diferenciación de las unidades formadoras de  colonias eritroides (UFC-E) en precursores  eritroides. Cada una de las cadenas  polipeptídicas de la Hb cuenta con genes propios: α, β, δ, γ, ε. Los genes α y β son independientes y se ubican en cromosomas distintos. El grupo α, se localiza en el brazo corto del cromosoma 16 y contiene además los codificadores de la cadena z. El grupo β se localiza en el brazo corto del cromosoma 11 e incluye a los genes de las cadenas γ, δ y ε. 
La causa más común de las hemoglobinopatías es la mutación puntual, es decir, la sustitución de un nucleótido de ADN por otro, lo que modifica el código genético y puede inducir un cambio en un aminoácido de la globina resultante. 

* A continuación se añade un esquema explicando la biosintesis de la hemoglobina.


Eritropoyesis
Proceso de formación de nuevos glóbulos rojos o eritrocitos. Se realiza en la médula ósea y está regulado por la hormona eritropoyetina. A partir de células madre de la médula ósea se forman los proeritroblastos, unas células de gran tamaño y núcleo voluminoso. De ellas derivan los eritoblastos, que en sucesivas divisiones acaban perdiendo el núcleo hasta formar reticulocitos. Los reticulocitos maduran, se vierten a la sangre y se convierten en glóbulos rojos.
La eritropoyetina es una hormona segregada por el rinón y activada en el hígado. Cuando el cuerpo tiene necesidad de más glóbulos rojos aumenta la producción de eritropoyetina, lo que estimula la creación de eritrocitos. En la eritropoyesis es muy importante la disponibilidad de hierro, vitamina B12 y ácido fólico mediante la dieta diaria. Los glóbulos rojos tienen una vida media de 120 días.

* A continuación se añade un esquema que explica el proceso de la eritropoyesis.


Leucopoyesis
Proceso de formación de nuevos glóbulos blancos o leucocitos. Se realiza en la médula ósea. A partir de células madre de la médula ósea se forman los mieloblastos, que en sucesivas divisiones y maduración se convierten en glóbulos blancos de tipo granulocito. Otras células precursoras son los monoblastos, que dan lugar a los monocitos. Los linfocitos se derivan a partir de unas células linfoides.
Hay tres tipos de leucocitos o glóbulos blancos: los granulocitos, los linfocitos y los monocitos. Los granulocitos son de tres clases: neutrófilos, basófilos y eosinófilos. Cada tipo de leucocito tiene unas funciones defensivas características y especializadas.

* A continuación se añade un esquema donde se explica mas detallado este proceso.


Trombopoyesis
Proceso de formación de nuevas plaquetas o trombocitos. Se realiza en la médula ósea y está regulado por la hormona trombopoyetina. A partir de células madre de la médula ósea se forman los megacarioblastos, que en sucesivas divisiones y maduración se convierten en megacariocitos que al fragmentarse liberan las plaquetas a la sangre.
 Las plaquetas de la sangre se utilizan para formar coágulos y taponar heridas o lesiones hemorrágicas. Su ciclo vital es de unos 8 a 10 días, al cabo de los cuales son destruidas en el bazo.
* A continuación se añade un esquema que explica mas detalladamente este proceso.


HORMONAS HIPÓFISIARIAS.

La glándula hipófisis fue considerada como la glándula "maestra" del cuerpo, pues es la fuente de hormonas que estimulan los órganos reproductores, la corteza de la glándula suprarrenal y la tiroides. Sin embargo, son las hormonas del hipotálamo las que estimulan o, en algunos casos, inhiben la producción de hormonas hipofisarias.

La hipófisis, está situada en la base del cerebro, en el centro geométrico del cráneo. Está formada por tres lóbulos: el anterior, el intermedio y el posterior. El lóbulo anterior es la fuente de al menos seis hormonas diferentes, producida cada una por células distintas. Una de éstas es la somatotrofina, la cual estimula la síntesis  proteica y promueve el crecimiento de lo huesos. Esta hormona también afecta el metabolismo de la glucosa, inhibiendo la absorción y la oxidación de glucosa por algunos tipos de células. También estimula la degradación de ácidos grasos, conservando así la glucosa. La hipófisis anterior también produce prolactina, que estimula la secreción de leche en los mamíferos. Su producción es controlada por una hormona inhibidora producida por el hipotálamo.

Las hormonas tróficas secretadas por la hipófisis anterior actúan sobre otras glándulas endocrinas regulando sus secreciones. Una de estas hormonas tróficas es la TSH o tirotrofina, la hormona que estimula las células de la glándula tiroides incrementando la producción y liberación de la hormona tiroidea tiroxina. La hormona adrenocorticotrófica (ACTH) tiene una relación reguladora similar con la producción de cortisol, una de las hormonas producidas por la corteza suprarrenal. Las otras dos hormonas tróficas secretada por la hipófisis anterior son las gonadotrofinas -hormonas que actúan sobre las gónadas § u órganos productores de gametos (testículos y ovarios)-. Son las hormonas foliculoestimulante (FSH) y luteinizante (LH).

Las hormonas trópicas son producidas por células especializadas distintas. La capacidad de respuesta de un tejido a la acción de una hormona depende de la presencia de receptores específicos de membrana a los cuales se unen las hormonas.
En muchos vertebrados, el lóbulo intermedio de la hipófisis es la fuente de la hormona estimulante de los melanocitos. En los reptiles y los anfibios, esta hormona estimula los cambios de color asociados con el camuflaje o con patrones de comportamiento como la agresión y el cortejo. En los humanos, en los cuales la secreción de hormona está notablemente disminuida, sus funciones se desconocen. El lóbulo posterior de la hipófisis almacena las hormonas producidas por el hipotálamo, (ADH y oxitocina).

* A continuación se añade un esquema donde se explica las partes, hormonas secretadas y sus funciones de la hipófisis.